Daudzveidīgas rauga pretvīrusu sistēmas novērš letālu patoģenēzi, ko izraisa LA mikovīruss
Dec 01, 2023
Jaunākie pētījumi liecina, ka pretvīrusu sistēmas ir ievērojami konservētas no baktērijām līdz zīdītājiem, parādot, ka unikālu ieskatu šajās sistēmās var gūt, pētot mikrobu organismus. Tomēr atšķirībā no baktērijām, kur fāgu infekcija var būt letāla, topošajam raugam Saccharomyces cerevisiae nav zināmas citotoksiskas vīrusu sekas, lai gan tas ir hroniski inficēts ar divpavedienu RNS mikovīrusu, ko sauc par LA. Tas joprojām notiek, neskatoties uz iepriekšēju konservētu pretvīrusu sistēmu identificēšanu, kas ierobežo LA replikāciju. Šeit mēs parādām, ka šīs sistēmas sadarbojas, lai novērstu niknu LA replikāciju, kas izraisa letalitāti šūnās, kas audzētas augstā temperatūrā. Izmantojot šo atklājumu, mēs izmantojam pārmērīgas ekspresijas ekrānu, lai noteiktu pretvīrusu funkcijas poliA saistošā proteīna (PABPC1) un La domēnu saturošā proteīna Larp1 rauga homologiem, kas abi ir iesaistīti vīrusu iedzimtajā imunitātē cilvēkiem. Izmantojot papildu funkciju zaudēšanas pieeju, mēs identificējam jaunas pretvīrusu funkcijas konservētajām RNS eksonukleāzēm REX2 un MYG1; SAGA un PAF1 hromatīna regulējošie kompleksi; un HSF1, proteostatiskā stresa reakcijas galvenais transkripcijas regulators. Izpētot šīs pretvīrusu sistēmas, mēs parādām, ka LA patoģenēze ir saistīta ar aktivizētu proteostatiskā stresa reakciju un citotoksisko olbaltumvielu agregātu uzkrāšanos. Šie atklājumi identificē proteotoksisko stresu kā LA patoģenēzes cēloni un turpina uzlabot raugu kā spēcīgu modeļa sistēmu konservētu pretvīrusu sistēmu atklāšanai un raksturošanai.
Visi jaunveidojošā rauga S. cerevisiae laboratorijas celmi un lielākā daļa vides izolātu ir inficēti ar divpavedienu RNS (dsRNS) vīrusu, ko sauc par LA (1, 2). LA pieder plaši izkliedētai endogēno dsRNS vīrusu Totiviridae ģimenei. Tāpat kā visi šīs ģimenes vīrusi, LA dsRNS genoms ir iepakots virionā, kas to pasargā no saimnieka izraisītas gremošanas. Caurumi virionā ļauj izspiest RNS transkriptus citozolā, kas kodē kapsīda proteīnu Gag, kas satur lielāko daļu daļiņu. LA transkripts kodē arī Gag-pol saplūšanas proteīnu, kas ražots daudz zemākā līmenī nekā Gag proteīns, kam piemīt no RNS atkarīga RNS polimerāzes aktivitāte. Katrs virions satur Gag-pol proteīnu, kas nodrošina LA replikāciju un transkripciju daļiņā. Vīrusa transkriptu iekapsēšana topošajās daļiņās un negatīvās RNS virknes sintēze ar Gag-pol palīdzību, veidojot dsRNS genomu, pabeidz LA replikācijas ciklu (2). Lai ražotu šos proteīnus, LA izmanto iezīmes, kas raksturīgas cilvēkiem sastopamajiem RNS vīrusiem, tostarp "vāciņu sagrābšanas" mehānisms, kas nodrošina LA transkriptus ar 5′-metila vāciņu un ribosomu kadru maiņas mehānismu, lai ražotu Gag un Gag-pol saplūšanas proteīnus no. viens transkripts (3, 4).

cistanche tubulosa-uzlabo imūnsistēmu
Nesenie baktēriju pretvīrusu sistēmu pētījumi ir parādījuši, ka tām ir ievērojama evolūcijas saglabāšanās ar cilvēkiem, atklājot mikrobu organismu potenciālu sniegt jaunu ieskatu vīrusu iedzimtajā imunitātē (5–11). Patiešām, agrīnie pētījumi, kuros bija iesaistīti LA, ļāva atklāt divas pretvīrusu sistēmas, kurām vēlāk tika pierādīts, ka tās veicina iedzimtu imunitāti pret dažādiem RNS vīrusiem zīdītājiem (12–17). Pirmā no šīm pretvīrusu sistēmām ietver SKI2, 3 un 8 gēnus, kas kodē konservēta ar ribosomu saistītu kompleksu apakšvienības, kas iebilst pret to transkriptu tulkošanu, kuriem trūkst poli (A) astes, piemēram, LA (18–23). Atsevišķs LA vājināšanās ceļš notiek caur Xrn1 (pazīstams arī kā SKI1), 5′-3′ eksoribonukleāzi, kas noārda uncapped mRNS (24-26).
Nesen mēs atklājām, ka mitohondriju DNS / RNS endonukleāze Nuc1 nomāc LA uzkrāšanos sporulējošās šūnās, kas pārstāv jaunu rauga pretvīrusu ceļu (27). Nuc1 ir endonukleāzes G (EndoG) homologs, kas atrodams visos eikariotos un daudzos prokariotos, un tas ir visvairāk pazīstams ar savu lomu genoma fragmentācijas veicināšanā zīdītāju programmētas šūnu nāves laikā, kas ir ievērojams vīrusu aizsardzības pēdējais līdzeklis (28, 29). Interesanti, ka ieprogrammēta šūnu nāve ir raksturīga rauga sporulācijai, un Nuc1 fragmentē DNS no mirstošiem meiotiskiem produktiem šī procesa laikā papildus tā lomai LA vīrusu līmeņa mazināšanā, ko manto izdzīvojušās sporas (27, 30, 31).
Neskatoties uz LA visuresošo klātbūtni laboratorijas celmos, tam nav attiecinātas nekādas fitnesa sekas, un tāpēc LA lielākoties tiek uzskatīta par nekaitīgu komensālu. Šeit mēs parādām, ka LA infekcija patiesībā ir nāvējoša raugam un ka tā ir aktīvi jāmazina, izmantojot vīrusu iedzimto imunitāti, lai saglabātu dzīvotspēju. Konkrēti, celmos, kuriem trūkst paralēlas darbības NUC1 un SKI pretvīrusu ceļu, LA kopiju skaits ir ievērojami palielināts, izraisot letalitāti augstās temperatūrās.
cistanche tubulosa-uzlabo imūnsistēmu
Mēs pamatojām, ka turpmāka LA raksturošana un faktori, kas uztur tā replikāciju zemā līmenī, varētu atklāt jaunas pretvīrusu sistēmas. Identificējot apstākļus, kas noved pie LA patoģenēzes, mēs varam izmantot bioinformātiskās un tālākās ģenētiskās skrīninga pieejas, lai atklātu jaunus pretvīrusu gēnus. Izmantojot ekrānu pārmērīgi ekspresētiem gēniem, kas nomāc nuc1∆ ski3∆ nosacīto letalitāti, mēs identificējam pretvīrusu funkcijas poli(A) saistošā proteīna (PABPC1) un La domēnu saturošā proteīna Larp1 rauga homologiem, kas abi ir iesaistīti vīrusa iedzimtajā. imunitāte cilvēkiem (32, 33). Turklāt funkciju zaudēšanas ģenētiskie pētījumi identificēja divpadsmit jaunus pretvīrusu gēnus. Starp tiem ir ļoti konservēts SAGA transkripcijas koaktivatora komplekss un vairākas RNS eksonukleāzes, tostarp REX2 un MYG1, kurām abām ir atšķirīgi, bet slikti raksturoti cilvēka un baktēriju homologi (34–37).
Visbeidzot, mēs raksturojam LA patoģenēzi, izmantojot šūnu bioloģiskās metodes, un atklājam, ka augsta vīrusu slodze izraisa proteostatisko stresu. Tā kā ir labi zināms, ka augsta temperatūra pastiprina proteostatisko stresu, šie novērojumi liecina, ka katastrofāls proteostatiskais stress ir LA izraisītas letalitātes cēlonis. Saskaņā ar šo hipotēzi mēs parādām, ka nuc1∆ ski3∆ mutantiem ir LA atkarīga jutība pret azetidīna -2- karbonskābi (AZC), prolīna analogu, kas, kā zināms, izraisa ortostatisku stresu (38). Turklāt mēs demonstrējam pretvīrusu funkciju HSF1, konservētam transkripcijas faktoram, kas uztver un virza reakciju uz ortostatisko stresu. Interesanti, ka cilvēka Hsf1 arī spēlē nozīmīgu lomu dažādu vīrusu, tostarp HIV, SARS-Cov-2 un tropu drudža vīrusa, replikācijā un/vai patogenitātē, lai gan mehānismi nav skaidri (39). Šie atklājumi sniedz jaunus piemērus iedzimtai imūnsistēmas saglabāšanai no mikrobiem uz cilvēkiem un turpmāku augstas gaismas raugu kā spēcīgu modeļa sistēmu jaunu pretvīrusu sistēmu atklāšanai.
Rezultāti
NUC1, SKI un XRN1 rauga pretvīrusu sistēmas sadarbojas, lai novērstu LA patoģenēzi.
Mūsu iepriekšējie NUC1 pētījumi bija vērsti uz meiotiskām šūnām (27). Lai izpētītu NUC1 pretvīrusu funkciju veģetatīvi augošā raugā, mēs pārbaudījām LA kopiju skaitu mitotiskās haploīdajās šūnās atsauces BY4742 celma fonā. Mēs novērojām LA dsRNS līmeni, izmantojot elektroforēzes RNS krāsošanu ar etīdija bromīdu, un konstatējām, ka nuc1∆ ski3∆ dubultmutants uzrādīja lielu LA dsRNS pieaugumu (1. att. A). Mēs apstiprinājām šos atklājumus, izmantojot imunofluorescences mikroskopiju ar dsRNS antivielu, ko izmanto, lai noteiktu replikējošus RNS vīrusus (40, 41). Šie attēli parādīja, ka LA dsRNS uzkrājas perēkļos, kas atgādina "vīrusu rūpnīcas" vīrusu replikācijas vietas, kas novērotas cilvēka šūnās (1. att. B un SI papildinājums, S1 att.) (42). Saskaņā ar iepriekšējiem atklājumiem citu celmu fonos (24, 27, 43), Western blotēšana parādīja, ka Gag proteīna līmenis bija paaugstināts nuc1∆ un ski3∆ mutantos (1. att. C). Turklāt mēs parādījām, ka nuc1∆ ski3∆ dubultais mutants uzkrāja ievērojami paaugstinātu Gag līmeni (1. att. C). Šie dati liecina, ka NUC1 un SKI3 piedalās atsevišķos pretvīrusu ceļos un ka abu ceļu zudums ievērojami palielina LA vīrusu slodzi.
Lai noteiktu, vai augsta LA vīrusu slodze ietekmē šūnu piemērotību, mēs pārbaudījām rauga augšanu, izmantojot vietas testa augšanas testus. Smalki nuc1∆ un ski3∆ atsevišķu mutantu augšanas defekti tika novēroti pie 37 grādiem, kad šūnas tika audzētas ar glicerīnu, nevis glikozi kā oglekļa avotu, un tas ir stāvoklis, kurā raugs paļaujas uz mitohondriju elpošanu (1. att. D). Jāatzīmē, ka, lai gan nuc1∆ ski3∆ dubultmutanti normāli auga pie 30 grādiem, tiem bija nosacīta letalitāte 37 grādos neatkarīgi no oglekļa avota (1. att. D). Kā gaidīts, dzīvotspēja augstā temperatūrā tika atjaunota nuc1∆ ski3∆ dubultmutantam, izmantojot NUC1-ekspresējošu plazmīdu, kas izraisīja atbilstošu Gag līmeņa pazemināšanos (1. att. C un D). Lai apstiprinātu, ka nuc1∆ ski3∆ dubultmutanta augšanas defektu izraisīja LA, mēs izveidojām izogēnu celmu, kas izārstēts no LA (LA0 ), un pārbaudījām tā augšanu augstā temperatūrā. Mēs atklājām, ka augšanas defekts tika pilnībā atvieglots, kas nozīmē, ka nosacītā letalitāte bija neierobežotas LA replikācijas rezultāts (1. att. D). Lai novērtētu augstā LA kopiju skaita ietekmi uz šūnu piemērotību optimālos augšanas apstākļos, mēs izmērījām proliferācijas ātrumu šķidrā kultūrā. Šie pētījumi atklāja samazinātu augšanas ātrumu nuc1∆ ski3∆ dubultmutantiem, salīdzinot ar savvaļas tipu 30 grādu leņķī, kas L-A0 celmiem tika mainīts, parādot, ka liela LA slodze kaitē fitnesam pat nestresotās šūnās (SI pielikums, 1. att.). S2).

cistanche augu paaugstinošā imūnsistēma
Noklikšķiniet šeit, lai skatītu Cistanche Enhance Immunity produktus
【Jautājiet vairāk】 E-pasts:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Lai vēl vairāk raksturotu, kā NUC1 mijiedarbojas ar zināmiem pretvīrusu ceļiem, mēs pārbaudījām tā saistību ar XRN1. Mēs noskaidrojām, ka nuc1∆ xrn1∆ dubultmutants uzkrāja ievērojami paaugstinātu Gag līmeni, salīdzinot ar vienu mutantu, un uzrādīja no LA atkarīgu nosacītu letalitāti augstā temperatūrā (SI pielikums, S3 A un B att.), kas liecina, ka NUC1 un XRN1 darbojas paralēli ceļi, lai vājinātu LA. Atspoguļojot to galvenās nevajadzīgās lomas lielapjoma mRNS regulējumā, xrn1∆ ski3∆ dubultais mutants ir neiedzīvojams pat celmos, kuriem trūkst LA (44). Lai noteiktu, vai XRN1 ir pretvīrusu sistēma, kas nav atkarīga gan no NUC1, gan SKI3, mēs izmantojām augstas kopijas plazmīdu, lai pārmērīgi ekspresētu XRN1 nuc1∆ ski3∆ dubultā mutantā. Patiešām, mēs novērojām būtisku Gag līmeņa samazināšanos un nuc1∆ ski3∆ nosacītās letalitātes nomākšanu, izmantojot plazmīdu vadītu XRN1 pārmērīgu ekspresiju (1. att. C un D). Mēs secinām, ka Nuc1, Ski3 un Xrn1 konverģenti iebilst pret LA replikāciju un ka masveidā palielināta LA vīrusu slodze nuc1∆ ski3∆ vai nuc1∆ xrn1∆ mutantos izraisīja letālu patoģenēzi augstās temperatūrās (1. att. E).
Uz bioinformātiku balstīts ģenētiskais ekrāns identificē jaunus pretvīrusu faktorus.
No LA atkarīgā nosacītā nuc1∆ ski3∆ dubultmutantu letalitāte radīja iespēju, ka kombinatoriskos mutantu pētījumos var identificēt citus pretvīrusu faktorus. Lai identificētu jaunus pretvīrusu faktorus, mēs meklējām izveidotā ģenētiskās mijiedarbības datubāzē gēnu dzēšanu, kas izraisīja sintētisku augšanas defektu, ja to apvienoja ar nuc1∆ vismaz divos augstas caurlaidības skrīninga pētījumos (45). Papildus paredzamajai XRN1 un SKI dzēšanas klātbūtnei šajā datu kopā mēs atradām sešpadsmit papildu gēnus. Mēs izmantojām ģenētisko krustošanu, lai izveidotu trīskāršus mutantus, apvienojot katra no šiem sešpadsmit gēnu dzēšanu ar nuc1∆ski3∆, un apstiprinājām sešus, kas izraisīja nopietnus augšanas defektus (1. Mēs noskaidrojām, ka sintētiskie augšanas fenotipi, ko izraisa katrs no šiem gēniem, LA0 celmos tika mainīti, kas liecina, ka tie kodē pretvīrusu proteīnus (1. tabula). Tālāk mēs aprakstām vairāku šo ekrāna trāpījumu apstiprinājumu kā jaunus pretvīrusu faktorus.
Viens gēns, kas identificēts mūsu ekrānā, REX2, kodē 3′-5′ RNS eksonukleāzi, kas saglabājusies no baktērijām uz cilvēkiem (35). Gan Rex2, gan tā cilvēka homologs REXO2 lokalizējas mitohondrijās un satur EXOIII domēnu, kas plaši atrodams prokariotu un eikariotu proteīnos, tostarp interferona stimulētā pretvīrusu proteīnā ISG20 (36, 37, 46–48). Mēs atklājām, ka rex2∆ nuc1∆ dubultmutanta celms uzkrāja ievērojami paaugstinātu Gag līmeni, salīdzinot ar vienu mutantu, un uzrādīja no LA atkarīgus augšanas defektus, tostarp letalitāti augstā temperatūrā (2. att. A un B, un SI pielikums, att.). S2). Rex2∆ viena mutanta celms uzrādīja nelielu Gag līmeņa paaugstināšanos, lai gan šis efekts bija nenozīmīgs (2.B att.). Lai rūpīgi pārbaudītu rex2∆ sekas LA kopiju skaitam, mēs kvantitatīvi noteicām LA RNS, izmantojot RT-qPCR. Šie mērījumi apstiprināja, ka rex2∆ nuc1∆ celmi uzkrāj ievērojami paaugstinātu LA līmeni, lai gan tie arī atklāja, ka rex2∆ viens mutants neuzkrāja palielinātu LA RNS (2. att. C). Šie atklājumi liecina, ka Rex2 pretvīrusu loma ir redzama tikai tad, ja nav NUC1 funkcijas. Jāatzīmē, ka nuc1∆ ski3∆ rex2∆ un nuc1∆ xrn1∆ rex2∆ trīskāršie mutanti bija nedzīvojami visos augšanas apstākļos, un šie defekti tika novērsti L-A0 celmiem (2. att. D). Šie atklājumi parāda LA mikovīrusa smago patogēno potenciālu un identificē jaunu pretvīrusu lomu ļoti konservētai mitohondriāli lokalizētai RNS eksonukleāzei.

1. att. LA vājināšanās aizsargā raugu no letālas patoģenēzes. (A) Parādīts ar etīdija bromīdu krāsots kopējās RNS gēls, kas sagatavots no norādītajiem celmiem, ar 4,6 kb LA dsRNS joslu, kas norādīta ar bultiņu. (B) Imunofluorescence tika izmantota, lai vizualizētu LA dsRNS (oranžu) norādīto genotipu šūnās. Šie celmi tika izārstēti no vāji bagātīgā L-BC dsRNS vīrusa, lai novērstu fona krāsojumu (metodes informācija). DNS DAPI krāsošana ir zilā krāsā. (Mēroga josla, 1 μm.) (C) Parādīta LA Gag un 3-fosfoglicerāta kināzes (Pgk1) proteīna līmeņa Western blotēšana norādītajos celmos. Molekulmasas marķieri ir norādīti labajā pusē. (D) Tiek parādīti 1C celmu augšanas testu testi. Celmi tika pamanīti uz -Leu barotnes, kas satur glikozi vai glicerīnu, un audzēti norādītajā temperatūrā. (E) Mitohondriju proteīns Nuc1 sadarbojas ar citozola proteīniem Xrn1 un SkiC, lai regulētu LA proteīna līmeni un nodrošinātu šūnu piemērotību.
Vēl viens mūsu ekrānā identificētais gēns bija MYG1, cilvēka MelanocYte proliferācijas 1. gēna rauga homologs, 3′-5′ RNS eksonukleāze, kurai ir homologi visos taksonos (34). Mutantu celmiem, kas apvieno myg1∆ un nuc1∆, bija liels Gag proteīna un LA RNS pieaugums, salīdzinot ar atsevišķiem mutantiem, un tiem bija smagi LA atkarīgi augšanas defekti augstā temperatūrā un šķidrā kultūrā (2. att. C un SI pielikums, S2, S4 att. A un C). Tāpat kā ar rex2∆, myg1∆ viens mutants celms uzrādīja nelielu pieaugumu Gag līmeni un nekādas izmaiņas LA RNS (Zīm. 2 C un SI pielikums, S4C att.). Mums izdevās atgūt nuc1∆ ski3∆ myg1∆ trīskāršos mutantus, lai gan tie bija ārkārtīgi lēni auguši 30 grādos un uzkrāja vēl augstākus Gag līmeņus (SI pielikums, S4 A un C att.). Šie augšanas defekti tika novērsti arī L-A0 celmiem (SI pielikums, S4A att.). Tādējādi MYG1 ir jauns pretvīrusu faktors, kas darbojas paralēli gan NUC1, gan SKI kompleksam.
1. tabula. Jaunu pretvīrusu faktoru kandidātu identificēšana, izmantojot bioinformātisko pieeju

Mutācijas, kas izraisa cilvēka MYG1 pārmērīgu ekspresiju, ir saistītas ar autoimūnu traucējumu vitiligo, kas liecina, ka MYG1 var spēlēt zināmu lomu cilvēka iedzimtajā imunitātē (49, 50). Mēs izpētījām šo iespēju, izmantojot plazmīdu, kas izsaka cilvēka MYG1, kontrolējot konstitutīvu rauga promotoru (34), un atklājām, ka cilvēka MYG1 izglāba nosacītu augšanas defektu nuc1∆ myg1∆ mutants (SI pielikums, S4D att.). Šie atklājumi liecina, ka rauga MYG1 pretvīrusu funkciju var veikt cilvēka MYG1, kas liecina par iespējamu MYG1 pretvīrusu funkciju cilvēkiem.

2. att. Jauni pretvīrusu faktori tiek identificēti, izmantojot LA patoģenēzi. (A) Tiek parādīta NUC1 un REX2 defektīvu celmu punktu analīze. Celmi tika pamanīti uz SC barotnēm, kas satur glikozi vai glicerīnu, un audzēti norādītajā temperatūrā. (B) Western blotēšana LA Gag un Pgk1 proteīna līmeni celmu 2. attēlā. Molekulmasas marķieri ir norādīti labajā pusē. (C) LA RNS tika kvantitatīvi noteikta ar qPCR un normalizēta līdz endogēnai ACT1 RNS. Tiek parādīts vidējais RNS līmenis un SD. n=5. *P < {{10}}.05, **P < 0,01, ***P < 0,001 (nepāra Studenta t tests). (D) Tiek parādīta celmu, kuriem ir defekti trīs paralēlos pretvīrusu ceļos, kas satur plazmīdu, kas ekspresē NUC1, punktu analīze. Celmi tiek pamanīti uz -URA barotnes vai sintētiskas pilnīgas (SC) barotnes, kas papildināta ar 0,1% 5-fluororotskābes (5-FOA).
Vēl viena gēnu kategorija, kas identificēta, izmantojot mūsu bioinformātisko ekrānu, bija gēnu ekspresija. CDC73 un SPT3 kodē attiecīgi konservēto ar hromatīnu saistīto kompleksu PAF1 un SAGA apakšvienības. Gan cdc73∆, gan spt3∆ izraisīja LA atkarīgu letalitāti, kombinējot ar nuc1∆ ski3∆ (1. tabula). Tā kā ir pierādīts, ka SAGA (SptAda-Gcn5-acetiltransferāze) pārregulē pretvīrusu gēnu ekspresiju kastaņu pūtītes sēnē Cryphonectria parasitica, mēs pētījām šo kompleksu sīkāk (51). Spt3∆ nuc1∆ dubultmutants celms uzkrāja paaugstinātu Gag līmeni un uzrādīja LA atkarīgu letalitāti augstās temperatūrās (SI pielikums, att. S4 B un C). SAGA ir liels olbaltumvielu komplekss, un mēs apstiprinājām, ka delecijām vairākos citos SAGA apakšvienību kodējošos gēnos bija tādas pašas fenotipiskas sekas kā spt3∆ (SI pielikums, S1 un S4C tabula). Kopā ar C. parasitica atklājumiem šie rezultāti liecina, ka SAGA komplekss kontrolē pretvīrusu gēnu ekspresiju dažādās sēnīšu sugās.
Augstas kopiju nomākšanas skrīnings identificē rauga pretvīrusu faktorus, kas ir arī pretvīrusu līdzekļi cilvēkiem.
Tā kā XRN1 pārmērīga ekspresija nomāca nuc1∆ ski3∆ celma augšanas defektus, mēs izvirzījām hipotēzi, ka citu pretvīrusu faktoru pārmērīga ekspresija radītu līdzīgu efektu, ko varētu izmantot kā ekrānu jaunu pretvīrusu sistēmu identificēšanai. Mēs izmantojām augstas kopijas plazmīdu nomākšanas ekrānu, lai noteiktu gēnus, kuru pārmērīga ekspresija mazināja nuc1Δ ski3Δ celma nosacītu letalitāti (metodes informācija). Izmantojot šo ekrānu, mēs identificējām SRO9, SLF1 un PAB1 kā nuc1∆ ski3∆ augstas kopiju slāpētājus, kas visi kodē ar ribosomām saistītos RNS saistošos proteīnus (3. att.) (52, 53). Sro9 un Slf1 ir paralogi lupus-autoantigēna (La) domēnu saturoši proteīni, kas plaši sastopami eikariotos. Proti, viņu cilvēka homologs Larp1 nesen tika identificēts proteīnu skrīnos, kas saistīti ar SARS-Cov-2 plus ssRNS vai nukleokapsīda virkni (32, 54). Larp1 bija galvenā uzmanība vienā no šiem pētījumiem, un tika pierādīts, ka tas vājina SARS-Cov-2 replikāciju cilvēka šūnās, lai gan tā mehānisms nav zināms (32). PAB1 kodē ļoti konservētu PolyA saistošo proteīnu, kas ir kopīgs vīrusu inhibīcijas mērķis cilvēkiem, izmantojot dažādus mehānismus (33). Mēs atklājām, ka pārmērīga PAB1 vai SRO9 ekspresija ievērojami samazināja Gag līmeni nuc1∆ ski3∆ mutantā, izskaidrojot to glābšanas fenotipus (3. B att.). Interesanti, ka, lai gan SLF1 pārmērīga izteiksme izglāba nuc1∆ ski3∆ augšanas defektu tikpat labi kā SRO9, tas neizraisīja Gag līmeņa samazināšanos (3. A un B att.). Šie atklājumi liecina, ka PAB1 un SRO9 izglābj šūnas, nomācot LA replikāciju, un ka SLF1 aizsargā šūnas no paaugstinātas vīrusu replikācijas patogēnajām sekām.

cistanche tubulosa-uzlabo imūnsistēmu
Augsts LA kopiju skaits izraisa citotoksisku proteostatisku stresu.
Lai gūtu ieskatu Sro9 un Slf1 pretvīrusu aktivitāšu atšķirīgajos mehānismos, mēs apsvērām, kādas varētu būt LA patoģenēzes fizioloģiskās sekas un kā SRO9 / SLF1 varētu tās atšķirīgi ietekmēt. Mēs atzīmējām iepriekšējo pētījumu, kurā NUC1 vai SKI kompleksu gēnu dzēšana izraisīja vāju GFP reportiera gēna indukciju, ko kontrolē Hsf1 (55), konservēts transkripcijas faktors, kas uztver proteostatisko stresu un aktivizē gēnu ekspresijas reakciju (56–58). ). Izmantojot plūsmas citometriju ar šo reportieri (HSE-GFP), mēs apstiprinājām šos rezultātus un konstatējām, ka nuc1∆ ski3∆ dubultmutants izraisīja sinerģisku un LA atkarīgu HSE-GFP aktivāciju (3. att. C un SI papildinājums, S5 att.). Mēs izvirzījām hipotēzi, ka masīvā Gag veidošanās, kas novērota nuc1∆ ski3∆ mutantos, izraisīja šo proteostatiskā stresa reakciju. To apstiprinot, HSE-GFP aktivizēšana nuc1∆ ski3∆ dubultā mutanta tika atcelta ar PAB1 vai SRO9 pārmērīgu ekspresiju, atspoguļojot šo gēnu ietekmi uz Gag uzkrāšanos (3. B un C att.). Proti, SRO9 paraloga SLF1 pārmērīga ekspresija nenovērsa HSE-GFP aktivāciju. Paralogo SRO9 un SLF1 gēnu evolūcijas atšķirības tādējādi ir radījušas dažādus pretvīrusu mehānismus, ar SRO9 nomācot vīrusu proteīnu uzkrāšanos un ar to saistīto proteostatisko stresu, un SLF1 šķietami aizsargā šūnas no vīrusu izraisīta proteostatiskā stresa toksiskajām sekām.
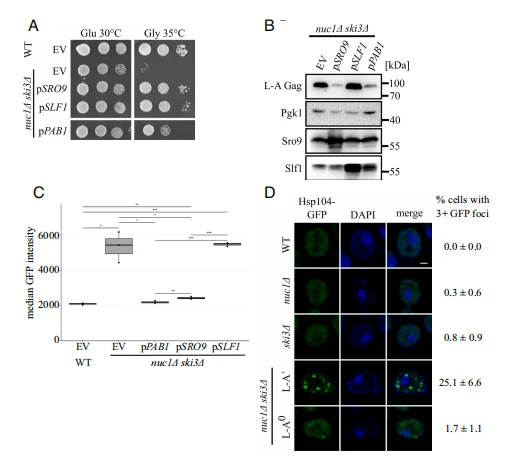
3. att. Translācijas kontroles faktoru pārmērīga ekspresija atvieglo LA patoģenēzi. (A) Tiek parādīti augsto kopiju slāpētāju SRO9, SLF1 un PAB1 augšanas testi. Celmi tika pamanīti uz –LEU barotnes, kas satur glikozi vai glicerīnu, un audzēti norādītajā temperatūrā. (B) Western blotēšana LA Gag, Pgk1, Sro9 un Slf1 proteīna līmenim celmos no 3A. Molekulmasas marķieri ir norādīti labajā pusē. (C) Plūsmas citometrija tika izmantota, lai izmērītu HSE GFP ekspresiju norādītajos celmos (n {{10}}). Pirmā un trešā kvartile ir atzīmētas ar pelēkām kastēm. Vidējā GFP intensitāte ir atzīmēta ar melnajām joslām. *P < 0.05, **P < 0,01, ***P < 0,001 (nepāra Studenta t tests). (D) Hsp104-GFP fluorescences mikroskopija norādītajos celmos. Šūnas tika iekrāsotas ar DAPI, lai vizualizētu kodolus. (Mēroga josla, 1 μm.) Labajā pusē ir parādīts to šūnu procentuālais daudzums, kurās ir 3+ GFP fokuss. n=3. Katram atkārtojumam tika saskaitītas 75 līdz 140 šūnas.
Proteostatiskais stress bieži ir saistīts ar citotoksisku olbaltumvielu agregātu uzkrāšanos, ko var vizualizēt, izmantojot GFP, kas sapludināts ar proteīna dezagregāzi Hsp104, kas ir tiešs Hsf1 transkripcijas aktivācijas mērķis, kas, kā zināms, lokalizējas ar olbaltumvielu agregātiem (59, 60). Lai sīkāk izpētītu ar LA patoģenēzi saistītos proteostatiskos defektus, mēs izmantojām fluorescences mikroskopiju, lai vizualizētu Hsp104-GFP perēkļus dažādos celmos. Kā gaidīts, savvaļas tipa šūnas, kas audzētas 30 grādu leņķī, reti uzkrāja novērojamos Hsp104-GFP perēkļus. Lai gan nuc1∆ un ski3∆ atsevišķie mutanti atgādināja savvaļas tipu, pārsteidzoši, nuc1∆ ski3∆ dubultmutants uzrādīja vairāk nekā 25% šūnu ar trim vai vairāk Hsp104-GFP perēkļiem (3. D attēls). Tāpat kā ar visiem citiem fenotipiem, ko esam novērojuši nuc1∆ ski3∆, Hsp104-GFP perēkļu uzkrāšanās bija atkarīga no LA klātbūtnes (3. D attēls). Šie atklājumi liecina, ka augsta vīrusu slodze, ko izraisīja NUC1 un SKI3 dzēšana, izraisīja Hsp104-GFP perēkļu uzkrāšanos, kas liecina par citotoksisku olbaltumvielu agregāciju.
Tā kā LA patoģenēze bija saistīta ar proteostatiskiem defektiem, mēs izvirzījām hipotēzi, ka Hsf1 darbosies kā pretvīrusu faktors. HSF1 dzēšana ir letāla, tāpēc mēs izmantojām temperatūras jutīgo alēli hsf1-848, kas iegūta no iepriekš publicētas celmu kolekcijas (61). Hsf1-848 alēlei nebija augšanas 39 grādos, vidēja augšanas fenotipa 37 grādos un nebija redzamu augšanas defektu 35 grādos (4.A attēls). Punktu testa testi parādīja, ka hsf1-848 augšanas fenotipi 35 grādos un 37 grādos tika ievērojami uzlaboti, ja tos kombinēja ar nuc1∆ vai ski3∆, un ka šie augšanas defekti tika novērsti celmiem, kuriem nebija LA vīrusa (4.A att.). . Kā gaidīts, visu hsf1-848 mutantu celmu dzīvotspēja saglabājās šūnās, kas audzētas 39 grādu temperatūrā neatkarīgi no LA klātbūtnes. Turklāt, izmantojot tetradu sadalīšanu, mēs parādījām, ka hsf1-848 nuc1∆ ski3∆ trīskāršie mutanti bija nedzīvojami pieļaujamajā temperatūrā, ja tie bija inficēti ar LA, bet veseli, ja tie bija iegūti no LA0 celma (SI). pielikums, att. S6). Izmantojot Western blotēšanu, mēs atklājām, ka hsf1-848 nuc1∆ un hsf1-848 ski3∆ uzkrāja palielinātu LA Gag daudzumu, salīdzinot ar atsevišķiem mutantiem (4.B att.). Kopā ar mūsu šūnu bioloģiskajiem pētījumiem šie atklājumi liecina, ka Hsf1-regulētā proteostatiskā stresa reakcija raugā darbojas kā pretvīrusu sistēma, iebilstot pret niknās LA replikācijas patogēnajām sekām.
Tā kā ir zināms, ka proteostatiskie defekti tiek saasināti un izraisa citotoksicitāti augstās temperatūrās (59), vienkāršs modelis LA patoģenēzes letālās sekas augstā temperatūrā attiecina uz katastrofālu proteostatisko stresu. Lai turpinātu pārbaudīt šo modeli, mēs apstrādājām celmus ar azetidīna-2-karbonskābi (AZC), prolīna analogu, kas ir iekļauts proteīnos, izraisot ortostatisku stresu (38). Šie eksperimenti parādīja, ka nuc1∆ ski3∆ uzrādīja spēcīgu jutību pret AZC tādā veidā, kas ir atkarīgs no LA vīrusa (4. att. C un SI pielikums, S6. att.). Turklāt mēs atklājām, ka nuc1∆ ski3∆ uzrādīja jutību pret 5% etanolu, kas arī izraisa proteostatiskus defektus, bet ne pret 0,5 M NaCl, kas izraisa osmotisko stresu (SI pielikums, S6. att.). Šie atklājumi liecina, ka LA patoģenēzes letālās sekas ir īpaši saistītas ar milzīgo proteostatisko stresu.

4. att. Karstuma šoka reakcija nomāc LA patoģenēzi. (A) Tiek parādīta HSF1, NUC1 un SKI3 defektīvu celmu analīze ar vai bez LA. Celmi tika pamanīti uz SC barotnēm, kas satur glikozi, un audzēti norādītajā temperatūrā. (B) Western blotēšana norādīto celmu LA Gag un Pgk1 proteīna līmenim. Molekulmasas marķieri ir norādīti labajā pusē. (C) Tiek parādīta ar proteotoksisku prolīna analogu, azetidīna-2-karbonskābi (AZC) apstrādātu celmu punktveida analīze. Celmi tika konstatēti uz SC barotnes, kas satur glikozi, kas papildināta ar vai bez 0,1 mg/mL AZC, un audzēta 30 grādu temperatūrā.
Diskusija
Neskatoties uz tā visuresošo klātbūtni laboratorijas celmos, LA dsRNS vīrusa pētījumi ir ierobežoti tā šķietami labdabīgā rakstura dēļ. Šeit mēs parādām, ka LA ir nopietnas sekas raugam, ja tā replikācija ir nekontrolēta, un ka dažādas iedzimtas imūnsistēmas uztur LA replikāciju pieļaujamā līmenī. Konkrēti, mēs parādām, ka celmos, kuriem trūkst paralēlas darbības NUC1 un SKI3 pretvīrusu gēnu, LA replikācija tiek masveidā regulēta, izraisot ortostatisku stresu un nosacītu letalitāti augstās temperatūrās. Izmantojot šo jauno atklājumu, mēs izmantojām bioinformātiskos un ģenētiskos ekrānus, lai identificētu jaunus rauga gēnus, kas darbojas, lai ierobežotu LA replikāciju vai aizsargātu šūnas no neierobežotas LA replikācijas patogēnajām sekām. Tā kā šie ekrāni nebija piesātināti, rauga genoms, iespējams, kodē daudzus citus pretvīrusu faktorus. Ir veikti daudzi ieskatu pētījumi ar raugu, pētot eksogēni ievadītu vīrusu RNS replikāciju no citiem organismiem, un būs interesanti noteikt, vai LA pretvīrusu faktori līdzīgi iedarbojas uz šīm vīrusu RNS (62, 63).
Ņemot vērā nepārprotamo LA infekcijas risku, tas, kā tas tomēr saglabājas, ņemot vērā pastāvīgo pretvīrusu aktivitāti, ir mulsinošs. Izskaidrojums šim paradoksam var būt tas, ka LA sniedz līdzsvarojošu labumu. Viens no iespējamiem LA ieguvumiem ir tas, ka tas ļauj dažiem celmiem uzturēt satelītvīrusus, kas kodē izdalītos toksīnus, kas nogalina blakus esošās neinficētās šūnas. Tomēr LA ir sastopams daudzos celmos, kuriem trūkst "Killer" pavadoņu, tāpēc šis skaidrojums nav pietiekams, lai izskaidrotu LA infekcijas noturību. Tādējādi mēs domājam, ka LA varētu būt kāds noslēpumains ieguvums, kas līdzsvaro tās kaitīgo potenciālu.
Mūsu atklājums par Rex2 kā vīrusu vājināšanas faktoru paplašina zināmo mitohondriju pretvīrusu faktoru arsenālu ārpus Nuc1 un liek domāt, ka mitohondriji ir galvenais pretvīrusu centrs raugā. Patiešām, mitohondrijiem ir galvenā loma vīrusu aizsardzībā kā ieprogrammēts šūnu nāves regulators un kā platforma pretvīrusu signalizācijai cilvēkiem. Kā mitohondriju nukleāzes vājina vīrusu, kas atrodas rauga citozolā? Viena iespēja ir tāda, ka šie fermenti, lai arī tie ir vērsti uz mitohondrijiem, tomēr var uzkrāties līdz zemam, bet pietiekamam līmenim citozolā, lai tieši veiktu LA vājināšanu. Saskaņā ar šo hipotēzi mēs iepriekš parādījām, ka Nuc1 uzkrājas meiotisko šūnu citozolā, lai gan mūsu metodes nevarēja to noteikt mitotisko šūnu citozolā (27). Vēl viena hipotēze ir tāda, ka daži LA replikācijas cikla aspekti notiek ciešā saistībā ar mitohondrijiem. Piemēram, LA transkripti var saistīties ar mitohondrijiem un, iespējams, šķērsot tos, pakļaujot tos Nuc1 un / vai Rex2. Mūsu rezultāti izceļ mitohondriju iespējamo vispārējo nozīmi vīrusu iedzimtajā imunitātē eukariotos un pozicionē rauga-LA sistēmu kā spēcīgu modeli turpmākiem šīs tēmas pētījumiem.
Pretvīrusu SKI komplekss, kas saistīts ar ribosomu translāciju, un mūsu identifikācija Pab1, Sro9 un Slf1 kā LA patoģenēzes augstu kopiju slāpētāji vēl vairāk atklāj translējošo ribosomu kā galveno rauga pretvīrusu aktivitātes centru. Atklājums, ka PAB1 (poliA saistošais proteīns) nomāc LA, ir pārsteidzošs, ņemot vērā to, ka LA transkriptos nav poliA astes, kas liecina, ka Pab1 tieši neiedarbojas uz LA. Iepriekšējie atklājumi parādīja, ka LA transkripti konkurē ar poliA+ rauga mRNS par 60S ribosomu apakšvienību uztveršanu, veidojot translējošus 80S kompleksus (64). Viens no modeļiem, kas izskaidro mūsu atklājumus, ir tāds, ka Pab1 uzlabo poliA asti saturošu mRNS translāciju, kas pēc tam samazina 60S apakšvienību pieejamību LA transkriptiem tulkošanai. Sro9 un Slf1 lomas tulkojumā ir mazāk saprotamas, taču to funkcijas var līdzīgi attiekties uz LA stenogrammu konkurenci par 60S apakšvienībām. Svarīgi, ka Pab1 un Sro9 / Slf1 homologi ir iesaistīti cilvēka vīrusu aizsardzībā, un turpmākie šo gēnu pētījumi raugā izgaismos pretvīrusu mehānismus, kas saglabājušies no rauga līdz cilvēkiem.

cistanche augu paaugstinošā imūnsistēma
Mēs identificējām konservētā transkripcijas faktora HSF1 pretvīrusu lomu kopā ar LA izraisītu proteostatiskā stresa reakciju, kas ietver Hsp104-GFP perēkļu uzkrāšanos, HSF1-aktivētu citotoksisko olbaltumvielu agregātu marķieri. Šie rezultāti atbalsta modeli, kurā LA patoģenēzi izraisa proteotoksiskais stress. Mēs atklājām arī pretvīrusu funkciju SAGA kompleksam, kas, kā pierādīts, darbojas kā Hsf1 mērķa gēna indukcijas koaktivators pēc karstuma šoka (65, 66). Šie novērojumi liecina, ka augsts LA līmenis izraisa SAGA atkarīgu Hsf1 mērķa gēnu aktivāciju, kas pēc tam veic pretvīrusu funkciju, apgaismojot potenciālo pretvīrusu gēnu ekspresijas programmu topošos raugos. Šis modelis sniedz daudzas pārbaudāmas prognozes, kas var būt saistītas ar vīrusu patoģenēzi citos organismos. Patiešām, cilvēka HSF1 kontrolē arī proteolītisko regulējošo faktoru ekspresiju. Lai gan ir aprakstītas cilvēka HSF1 pretvīrusu funkcijas, nav skaidrs, kāda loma šajā gadījumā ir ortostatiskajai stresa reakcijai (39). Mūsu atklājumi izgaismo spēcīgu sistēmu, lai noteiktu Hsf1 pretvīrusu funkciju attiecībā uz tās lomu proteostatiskā stresa reakcijas aktivizēšanā.
atsauces
1. T. Nakayashiki, CP Kurtzman, HK Edskes, RB Wickner, Yeast prions [URE3] un [PSI+] ir slimības. Proc. Natl. Akad. Sci. USA 102, 10575–10580 (2005).
2. RB Wickner, T. Fujimura, R. Esteban, Saccharomyces cerevisiae vīrusi un prioni. Adv. Virus Res. 86, 1.–36. (2013).
3. T. Fujimura, R. Esteban, Cap-snatching mehānisms in yeast LA double-stranded RNA virus. Proc. Natl. Akad. Sci. USA 108, 17667–17671 (2011).
4. JD Dinman, T. Icho, RB Wickner, -1 ribosomu kadru nobīde rauga divpavedienu RNS vīrusā veido gag-pol saplūšanas proteīnu. Proc. Natl. Akad. Sci. USA 88, 174–178 (1991).
5. A. Bernheim et al., Prokariotu viperīni ražo dažādas pretvīrusu molekulas. Nature 589, 120–124 (2021).
6. A. Bernheim, R. Sorek, The pan-immune system of baktērijas: pretvīrusu aizsardzība kā kopienas resurss. Nat. Rev. Microbiol. 18, 113–119 (2020).
7. AG Johnson et al., Baktēriju vadītāji atklāj senu šūnu nāves mehānismu. Science 375, 221–225 (2022).
8. BR Morehouse et al., STING ciklisko dinukleotīdu noteikšana radās baktērijās. Nature 586, 429–433 (2020).
9. G. Ofir et al., Baktēriju TIR domēnu pretvīrusu aktivitāte, izmantojot imūnās signalizācijas molekulas. Nature 600, 116–120 (2021).
10. KM Slavik et al., cGAS līdzīgi receptori uztver RNS un kontrolē 3'2'-cGAMP signālu pārraidi Drosofilā. Nature 597, 109–113 (2021).
11. AT Whiteley et al., Baktēriju cGAS līdzīgi enzīmi sintezē dažādus nukleotīdu signālus. Nature 567, 194–199 (2019).
12. HM Burgess, I. Mohr, Cellular 5'-3' mRNS eksonukleāze Xrn1 kontrolē divpavedienu RNS uzkrāšanos un pretvīrusu atbildes reakcijas. Šūnu saimnieka mikrobs. 17, 332–344 (2015).
13. SC Eckard et al., SKIV2L RNS eksosoma ierobežo RIG-I līdzīgo receptoru aktivāciju. Nat. Immunol. 15, 839–845 (2014).
14. M. Miyashita, H. Oshiumi, M. Matsumoto, T. Seya, DDX60, DEXD/H kastes helikāze, ir jauns pretvīrusu faktors, kas veicina RIG-I līdzīgu receptoru starpniecību. Mol. Cell Biol. 31, 3802–3819 (2011).
15. CS Ng, DM Kasumba, T. Fujita, H. Luo, XRN1-DCP1/2 agregācijas pretvīrusu aktivitātes telpiskais raksturojums pret citoplazmas RNS vīrusiem, lai novērstu šūnu nāvi. Cell Death Differ 27, 2363–2382 (2020).
16. RE Rigby, J. Rehwinkel, RNS degradācija pretvīrusu imunitātē un autoimunitātē. Trends Immunol. 36, 179–188 (2015).
17. F. Shiromoto et al., IL-1beta/ATF3-mediēta Ski2 ekspresijas indukcija pastiprina B hepatīta vīrusa x mRNS degradāciju. Biochem. Biofizija. Res. Commun. 503, 1854–1860 (2018).
18. JT Brown, X. Bai, AW Johnson, rauga pretvīrusu proteīni Ski2p, Ski3p un Ski8p pastāv kā komplekss in vivo. RNA, 6, 449–457 (2000).
19. DC Masison et al., Cap-mRNS degradācijas sistēmas pievilināšana ar divpavedienu RNS vīrusu un poli(A)-mRNS uzraudzība ar rauga pretvīrusu sistēmu. Mol. Cell Biol. 15, 2763–2771 (1995).
20. C. Schmidt et al., Ribosomu-Ski2-Ski3-Ski8 helikāzes kompleksa krio-EM struktūra. Science 354, 1431–1433 (2016).
21. AM Searfoss, RB Wickner, 3' poly(A) ir nepieciešams tulkošanai. Proc. Natl. Akad. Sci. USA 97, 9133–9137 (2000).
22. EA Toh, P. Guerry, RB Wickner, Saccharomyces cerevisiae hromosomu superkiller mutanti. J. Bacteriol. 136, 1002–1007 (1978).
23. A. Zinovjevs, RK Ajupovs, IS Abaeva, CUT Hellen, TV Pestova, mRNS ekstrakcija no apstādinātām ribosomām ar slēpošanas kompleksu. Mol. 77. šūna, 1340–1349 e1346 (2020).
24. SG Ball, C. Tirtiaux, RB Wickner, La un L-(Bc) Dsrna kopiju skaita ģenētiskā kontrole SACCHAROMYCES CEREVISIAE killer sistēmās. Genetics 107, 199–217 (1984).
25. R. Esteban, L. Vega, T. Fujimura, 20S RNS narnavirus izaicina SKI1/XRN1 pretvīrusu aktivitāti Saccharomyces cerevisiae. J. Biol. Chem. 283, 25812–25820 (2008).
26. PA Rowley, B. Ho, S. Bushong, A. Johnson, SL Sawyer, XRN1 ir sugai specifisks vīrusa ierobežošanas faktors raugos. PLoS Patogs. 12, e1005890 (2016).
27. J. Gao et al., Meiotiskā vīrusa vājināšanās caur senču apoptotisku ceļu. Proc. Natl. Akad. Sci. USA 116, 16454–16462 (2019).
28. LY Li, X. Luo, X. Wang, Endonukleāze G ir apoptotiska DNāze, kad tā tiek atbrīvota no mitohondrijiem. Nature 412, 95–99 (2001).
29. BJ Tomsons, Vīrusi un apoptoze. Int. J. Exp. Pathol. 82, 65–76 (2001).
30. MD Eastwood, SW Cheung, KY Lee, J. Moffat, MD Meneghini, Developmentally programmed kodolieroču iznīcināšana rauga gametoģenēzes laikā. Izstrādātājs Cell 23, 35–44 (2012).
31. MD Eastwood, MD Meneghini, Gametu diferenciācijas attīstības koordinācija ar ieprogrammētu šūnu nāvi sporulējošā raugā. Eukaryot Cell 14, 858–867 (2015).
32. N. Schmidt et al., SARS-CoV-2 RNS-proteīna mijiedarbība inficētās cilvēka šūnās. Nat. Microbiol. 6, 339–353 (2021).
33. RW Smith, NK Grey, poli(A) saistošais proteīns (PABP): izplatīts vīrusa mērķis. Biochem. J. 426, 1–12 (2010).
34. R. Grover et al., Myg1 eksonukleāze savieno kodolenerģijas un mitohondriju translācijas programmas, izmantojot RNS apstrādi. Nucleic Acids Res. 47, 5852–5866 (2019).
35. EV Koonin, konservēts senais domēns pievienojas augošajai 3'-5' eksonukleāžu virsģimenei. Curr. Biol. 7, R604–606 (1997).
36. M. Szewczyk et al., Cilvēka REXO2 kontrolē īsas mitohondriju RNS, ko rada mtRNS apstrādes un sabrukšanas iekārtas, lai novērstu divpavedienu RNS uzkrāšanos. Nucleic Acids Res. 48, 5572–5590 (2020).
37. Y. Zuo, MP Deutscher, Exoribonuclease superfamilies: Strukturālā analīze un filoģenētiskais sadalījums. Nucleic Acids Res. 29, 1017–1026 (2001).
38. EW Trotter, L. Berenfeld, SA Krause, GA Petsko, JV Grey, olbaltumvielu nepareiza salocīšana un temperatūras maiņa izraisa G1 apstāšanos, izmantojot kopēju mehānismu, kas ir atkarīgs no karstuma šoka faktora Saccharomyces cerevisiae. Proc. Natl. Akad. Sci. USA 98, 7313–7318 (2001).
39. A. Reyes, AJ Navarro, B. Diethelm-Varela, AM Kalergis, PA Gonzalez, Vai HSF1 ir nozīme vīrusu infekcijās? FEBS Open Bio 12, 1112–1124 (2022).
40. F. Weber, V. Wagner, SB Rasmussen, R. Hartmann, SR Paludan, Double-Stranded RNS ražo pozitīvās virknes RNS vīrusi un DNS vīrusi, bet ne nosakāmos daudzumos negatīvās virknes RNS vīrusi. J. Virols. 80, 5059–5064 (2006).
41. S. Welsch et al., Denges drudža vīrusa replikācijas un montāžas vietu sastāvs un trīsdimensiju arhitektūra. Šūnu saimnieka mikrobs. 5, 365–375 (2009).
42. I. Fernandess de Kastro, R. Tenorio, K. Risko, Vīrusu montāžas rūpnīcas lipīdu pasaulē. Curr. Atzinums. Virol. 18, 20–26 (2016).
43. YX Liu, CL Dieckmann, rauga vīrusa daļiņu pārprodukcija ar celmiem, kuriem trūkst mitohondriju nukleāzes. Mol. Cell Biol. 9, 3323–3331 (1989).
44. AW Johnson, RD Kolodner, Saccharomyces cerevisiae sep1 (xrn1) ski2 un sep1 (xrn1) ski3 mutantu sintētiskā letalitāte ir neatkarīga no killer vīrusa un liecina par šo gēnu vispārēju lomu translācijas kontrolē. Mol. Cell Biol. 15, 2719–2727 (1995).
45. C. Stark et al., BioGRID: vispārīga mijiedarbības datu kopu krātuve. Nucleic Acids Res. 34, D535–539 (2006).
46. L. Espert et al., ISG20, jauna interferona inducēta RNāze, kas ir specifiska vienpavedienu RNS, nosaka alternatīvu pretvīrusu ceļu pret RNS genoma vīrusiem. J. Biol. Chem. 278, 16151–16158 (2003).
47. T. Hanekamp, PE Thorsness, YNT20, yme1 yme2 apvada slāpētājs, kodē iespējamo 3'-5' eksonukleāzi, kas lokalizēta Saccharomyces cerevisiae mitohondrijās. Curr. Genet 34, 438–448 (1999).
48. A. van Hūfs, P. Lennercs, R. Pārkers, Trīs konservētiem RNāzes D saimes locekļiem ir unikālas un pārklājošas funkcijas 5S, 5.8S, U4, U5, RNāzes MRP un RNāzes P RNS apstrādē raugā. . EMBO J. 19, 1357–1365 (2000).
49. M. Dwivedi, NC Laddha, R. Begum, Paaugstinātas MYG1 ekspresijas un tās promotora polimorfisma korelācija ar slimības progresēšanu un augstāku jutību vitiligo pacientiem. J. Dermatol. Sci. 71, 195–202 (2013).
50. K. Kingo et al., MYG1, jaunam ar melanocītiem saistītam gēnam, ir paaugstināta ekspresija vitiligo gadījumā. J. Dermatol. Sci. 44, 119–122 (2006).
51. IB Andika, A. Jamal, H. Kondo, N. Suzuki, SAGA komplekss mediē pretvīrusu RNS klusēšanas transkripcijas augšupregulāciju. Proc. Natl. Akad. Sci. USA 114, E3499–E3506 (2017).
52. SG Sobel, SL Wolin, Two yeast La motīvu saturošie proteīni ir RNS saistoši proteīni, kas asociējas ar poliribosomām. Mol. Biol. Cell 10, 3849–3862 (1999).
53. A. Proweller, JS Butler, Poli(A) saistošo proteīnu ribosomu asociācija poli(A) deficītā Saccharomyces cerevisiae. J. Biol. Chem. 271, 10859–10865 (1996).
54. DE Gordon et al., SARS-CoV-2 proteīnu mijiedarbības karte atklāj narkotiku atkārtotas izmantošanas mērķus. Nature 583, 459–468 (2020).
55. O. Brandman et al., Ar ribosomām saistīts kvalitātes kontroles komplekss izraisa topošo peptīdu degradāciju un signalizē par translācijas stresu. Cell 151, 1042–1054 (2012).
56. J. Anckar, L. Sistonen, HSF1 funkcijas regulēšana siltuma stresa reakcijā: ietekme uz novecošanu un slimībām. Annu. Biochem. 80, 1089–1115 (2011).
57. J. Li, J. Labbadia, RI Morimoto, HSF1 pārdomāšana stresa, attīstības un organisma veselības jomā. Trends Cell Biol. 27, 895–905 (2017).
58. PK Sorger, HR Pelham, Karstuma šoka elementu saistoša proteīna no rauga attīrīšana un raksturojums. EMBO J. 6, 3035–3041 (1987).
59. EJ Solis et al., Rauga Hsf1 būtiskās funkcijas noteikšana atklāj kompaktu transkripcijas programmu eikariotu proteostāzes uzturēšanai. Mol. Cell 63, 60–71 (2016).
60. JR Glover, S. Lindquist, Hsp104, Hsp70 un Hsp40: jauna chaperone sistēma, kas glābj iepriekš agregētus proteīnus. Cell 94, 73–82 (1998).
61. Z. Li et al., Būtisku rauga gēna funkciju sistemātiska izpēte ar temperatūras jutīgiem mutantiem. Nat. Biotehnoloģija. 29, 361–367 (2011).
62. RY Zhao, Raugs vīrusu izpētei. Microb. Cell 4, 311–330 (2017).
63. T. Panavas, E. Serviene, J. Brasher, PD Nagy, Yeast genome-wide screen atklāj atšķirīgus saimniekgēnu komplektus, kas ietekmē RNS vīrusu replikāciju. Proc. Natl. Akad. Sci. USA 102, 7326–7331 (2005).
64. Y. Ohtake, RB Wickner, Rauga vīrusa izplatība ir ļoti atkarīga no brīvās 60S ribosomu apakšvienības koncentrācijas. Mol. Cell Biol. 15, 2772–2781 (1995).
65. SB Krēmers, DS Gross, SAGA un Rpd3 hromatīna modifikācijas kompleksi dinamiski regulē karstuma šoka gēnu struktūru un ekspresiju. J. Biol. Chem. 284, 32914–32931 (2009).
66. MD Leach et al., Hsf1 un Hsp90 organizē no temperatūras atkarīgu globālo transkripcijas remodelēšanu un hromatīna arhitektūru Candida albicans. Nat. Commun. 7, 11704 (2016).
67. CS Sitron, JH Park, JM Giafaglione, O. Brandman, CAT astes agregācija bloķē to degradāciju un izraisa proteotoksicitāti S. cerevisiae. PLoS One 15, e0227841 (2020).
68. L. Magtanong et al., Dosage supression ģenētiskās mijiedarbības tīkli uzlabo šūnas funkcionālās elektroinstalācijas shēmas. Nat. Biotehnoloģija. 29, 505–511 (2011).
69. V. Bilanchone et al., Ty3 retrotransposons nolaupa pārošanās rauga RNS apstrādes ķermeņus, lai inficētu jaunus genomus. PLoS Genet. 11, e1005528 (2015).
70. L. Ruan et al., Citosola proteostāze, importējot nepareizi salocītus proteīnus mitohondrijās. Nature 543, 443–446 (2017).