Askorbīnskābe regulē imunitāti, antioksidāciju un apoptozi Abalone Haliotis Discus Hannai Ino 2. daļā
Jul 31, 2023
3.5. Ar imūnsistēmu saistītu gēnu un proteīnu izpausmes pērļgliemenes gremošanas dziedzeros un žaunās
Cistanche glikozīds var arī palielināt SOD aktivitāti sirds un aknu audos un būtiski samazināt lipofuscīna un MDA saturu katrā audā, efektīvi attīrot dažādus reaktīvos skābekļa radikāļus (OH-, H2O₂ utt.) un aizsargājot no izraisītiem DNS bojājumiem. ar OH-radikāļiem. Cistanche feniletanoīda glikozīdiem ir spēcīga brīvo radikāļu attīrīšanas spēja, augstāka reducējošā spēja nekā C vitamīnam, tie uzlabo SOD aktivitāti spermas suspensijā, samazina MDA saturu un zināmā mērā aizsargā spermas membrānas darbību. Cistanche polisaharīdi var uzlabot SOD un GSH-Px aktivitāti eksperimentāli novecojošu D-galaktozes izraisītu peļu eritrocītos un plaušu audos, kā arī samazināt MDA un kolagēna saturu plaušās un plazmā, kā arī palielināt elastīna saturu. laba attīrošā iedarbība uz DPPH, pagarina hipoksijas laiku novecojošām pelēm, uzlabo SOD aktivitāti serumā un aizkavē plaušu fizioloģisko deģenerāciju eksperimentāli novecojošām pelēm Ar šūnu morfoloģisko deģenerāciju eksperimenti ir parādījuši, ka Cistanche ir labas antioksidanta spējas un tas var būt zāles ādas novecošanās slimību profilaksei un ārstēšanai. Tajā pašā laikā ehinakozīdam Cistančā ir ievērojama spēja attīrīt DPPH brīvos radikāļus un novērst reaktīvās skābekļa sugas un novērst brīvo radikāļu izraisītu kolagēna noārdīšanos, kā arī tam ir laba iedarbība uz timīna brīvo radikāļu anjonu bojājumiem.

Noklikšķiniet uz Cistanche Reddit, lai novērstu novecošanos
【Lai iegūtu plašāku informāciju:george.deng@wecistanche.com / WhatApp:8613632399501】
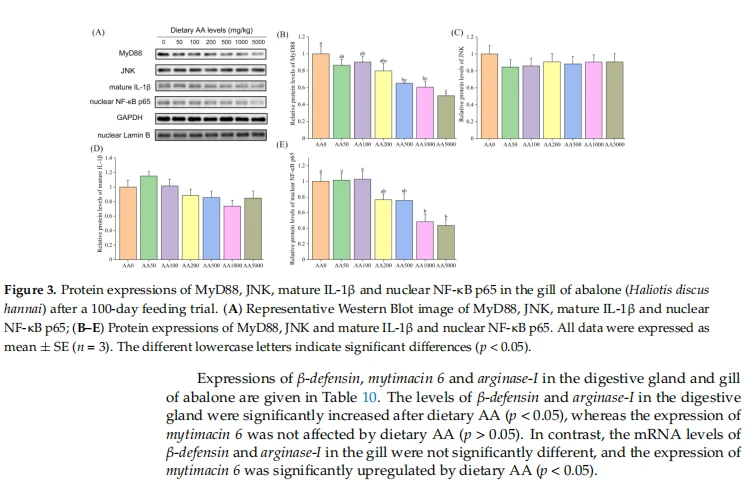
Pivotālo gēnu mRNS līmeņi nodevām līdzīgo receptoru (TLR) signālu ceļā pērļgliemenes gremošanas dziedzerī ir parādīti 6. un 7. tabulā. Tlr2 un tlr4 ekspresijas līmeņi gremošanas dziedzerī bija ievērojami pazemināti (p < { {5}}.{11}}5) un to zemākais līmenis bija AA1000 un AA500{{43 }} grupas, attiecīgi (6. tabula). The-a mRNS līmenis bija ievērojami paaugstināts (p < 0.05), un the-b neietekmēja gradētie uztura AA līmeņi (p > 0.05). ). Myd88, ar ceļojumu saistītās adaptera molekulas (tram), ar interleikīna 1 receptoriem saistītās kināzes 4 (irak4) un audzēja nekrozes faktora receptoriem saistītā faktora 6 (traf6) izpausmes tika ievērojami samazinātas pēc AA papildināšanas ar uzturu (p < 0,05). Traf4 neietekmēja AA papildināšanas līmenis (p > 0,05). Iκb kināzes (ikk ) un nf-κb inhibitora (iκb ) mRNS līmeni pērļgliemenes gremošanas dziedzerī neietekmēja AA ar uzturu (p > 0,05) (7. tabula). Tomēr p38 mitogēnu aktivētās proteīna kināzes (p38 atzīme) un nevēlamo vielu ekspresija tika ievērojami samazināta, palielinoties uztura AA (p <0, 05). Uztura AA var ievērojami samazināt nf-κb, aktivatora proteīna 1 (ap-1) un audzēja nekrozes faktora (tnf-) ekspresijas līmeni (p < 0,05), bet interleikīna 16 (il 16) līmenis nebija tāds. pakļauti uztura AA (p > 0,05). MyD88, JNK, nobriedušā IL-1 un kodola NF-κB p65 proteīna ekspresijas ir parādītas 2. attēlā. MyD88, nobriedušā IL-1 un kodola NF-κB p65 proteīna līmenis gremošanas traktā. pērļgliemenes dziedzeri ievērojami pazemināja uztura AA (p < 0,05). Turpretim JNK proteīna līmeni AA neietekmēja (p > 0, 05).

tlr2, tlr4 un the-b mRNS līmeņi pērļgliemenes žaunās būtiski neatšķīrās (p > 0.05), un darvas-a līmenis bija ievērojami samazināts pēc līmeņu noteikšanas. uztura AA (p < 0.05) (8. tabula). Turklāt myd88, irak4 un traf6 ekspresijas līmeņi pērļgliemenes žaunās tika ievērojami pazemināti, palielinoties AA līmenim uzturā (p < 0.{{20}}5). Tā vietā būtiskas atšķirības tramvaja un traf4 izteiksmēs netika novērotas (p > {{30}}.05). Uztura AA būtiski pazemināja ikk mRNS līmeni (p < 0,05), un AA neietekmēja iκb , p38 zīmes un junk izpausmes žaunās (p > 0,05) (9. tabula). Vienvirziena ANOVA atklāja, ka nf-κb, ap-1 un tnf- ekspresijas līmeņus ievērojami samazināja AA ar uzturu (p < 0,05), un netika novērotas būtiskas atšķirības il 16 līmeņos (p > 0,05). MyD88 un kodolenerģijas NF-κB p65 proteīna līmenis tika ievērojami pazemināts ar gradētiem uztura AA līmeņiem (p < 0,05) (3. attēls). Tomēr AA uzturā neietekmēja JNK un nobriedušā IL-1 olbaltumvielu ekspresiju āliņģu žaunās (p > 0,05).

-defensīna, mītu veidošanas 6 un argināzes-I izpausmes pērļgliemenes gremošanas dziedzerī un žaunās ir norādītas 1. tabulā0. Defensīna un argināzes-I līmenis gremošanas dziedzerī bija ievērojami paaugstināts pēc uztura AA (p < 0.05), savukārt mītu veidošanas izpausmi 6 neietekmēja uztura AA (p > 0,05). Turpretim -defensīna un argināzes-I mRNS līmeņi žaunās būtiski neatšķīrās, un mītu veidošanas 6 izpausmi būtiski regulēja uztura AA (p < 0,05).

3.6. Ar imūnsistēmu saistītu gēnu izpausmes gremošanas dziedzeros, reaģējot uz Vibrio Parahaemolyticus
Vairāku kritisko gēnu ekspresijas līmeņi TLR signalizācijas ceļā, kas satur tlr4, myd88, tram, nf-κb, ap-1 un tnf- pērļgliemenes gremošanas dziedzerī pēc V. parahaemolyticus infekcijas, ir parādīti 4. attēlā. tlr4, myd88, tram, nf-κb, ap-1 un tnf- mRNS ekspresijas tika ievērojami paaugstinātas pēc V. parahaemolyticus ievadīšanas (p < 0.05). tlr4 reizes izmaiņas bija visaugstākās AA0 grupā (10.24-}reizes) 24 stundas pēc inficēšanās, un pēc tam augstākais līmenis samazinājās līdz 3.{{ 20}}reizes AA5000 grupā 6 h. Myd88 mRNS līmenis tika ievērojami paaugstināts 12–72 stundās AA0 grupā (6 reizes) un 6–12 stundās AA5000 grupā (3 reizes) pēc V. parahaemolyticus infekcija. Tramvaja ekspresija pērļgliemenes gremošanas dziedzerī pēc V. parahaemolyticus infekcijas AA0 grupā ievērojami palielinājās no 12 stundām līdz 72 stundām un AA5000 grupā no 12 stundām līdz 24 stundām. Nf-κb izmaiņa reizes augstāko līmeni sasniedza 48 stundās AA0 grupā (10.{44}}reizes), kam sekoja augstākā līmeņa pazemināšanās 12 stundās AA5000 grupā (3.{48). }}locījuma maiņa). Ap-1 ekspresijas līmenis tika ievērojami paaugstināts no 6 h līdz 72 h AA0 un AA50 grupā, pēc tam 72 h pēc nepārtrauktas AA papildināšanas atjaunojās līdz normālam līmenim. TNF- locījuma maiņa sasniedza maksimumu 24 stundās pēc V parahaemolyticus infekcijas AA0, AA50, AA100, AA200 un AA500 grupās, un visaugstākais līmenis bija 12 stundās AA1000 un AA5000 grupās.

-defensīna un mītu veidošanas 6 līmeņu rezultāti gremošanas dziedzerī pēc V. parahaemolyticus infekcijas ir parādīti 5. attēlā. Defensīna un mītu veidošanas 6 ekspresijas līmeņi pērļgliemenes gremošanas dziedzerī bija ievērojami paaugstināti pēc V. parahaemolyticus infekcijas ( p < 0.05). Defensīna mRNS līmenis bija ievērojami paaugstināts AA0, AA50, AA100 un AA200 grupās 12 h un 24 stundās un sasniedza maksimumu 12 stundās AA200, AA500, AA1000 un AA5000 grupās ar 4 .51-fold, 4.74-fold, 5.20-fold un 5.{26}}fold, attiecīgi. Mītu veidošanas 6 izmaiņas pērļgliemenes gremošanas dziedzerī tika ievērojami paaugstinātas no 12 stundām līdz 24 stundām AA0, AA50, AA100, AA200 un AA500 grupās un no 6 stundām līdz 72 stundām AA1000 un AA5000 grupās. Augstākais mītu veidošanas izpausmes līmenis 6 tika novērots pēc 12 stundām AA5000 grupā ar 5.{43}}reizēm.

3.7. Ar antioksidāciju un apoptozi saistītu gēnu un proteīnu izpausmes gremošanas dziedzeros un žaunās
Nf-e2-saistītā faktora-2 (nrf2), gpx, cat un cuznsod mRNS līmenis pērļgliemenes gremošanas dziedzeros bija ievērojami paaugstināts ar gradētu AA līmeni uzturā (p < {{4). }}.05) (11. tabula). Turpretim Keap1 mRNS un olbaltumvielu līmenis bija ievērojami samazināts pēc uztura AA (p < 0.05), un AA neietekmēja glutationa-s-transferāzi (GST) (attēls). 6, 11. tabula) (p > 0.05). Žaunās nrf2 un gpx mRNS līmeni ievērojami palielināja AA ar uzturu (p < 0,05) (11. tabula). Tomēr keap1, cat, GST un cuznsod izpausmes žaunās nebija pakļautas gradētajam uztura AA līmenim (p> 0,05). Uztura AA būtiska ietekme uz Keap1 proteīna ekspresiju pērļgliemenes žaunās netika novērota (p > 0,05) (6. attēls).
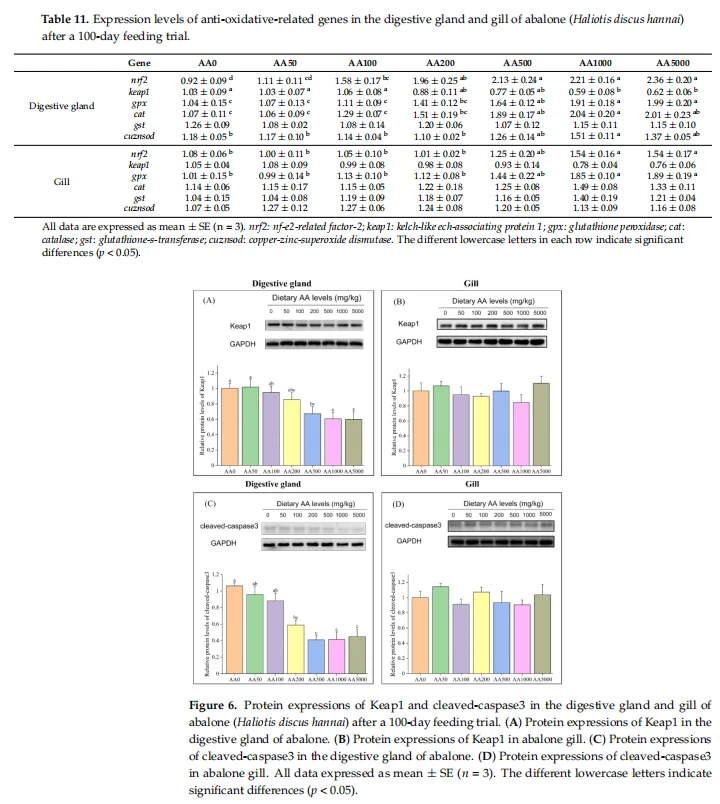
12. tabulā ir redzams, ka Baksa un kaspāzes3 ekspresijas līmeņi pērļgliemenes gremošanas dziedzerī bija ievērojami pazemināti pēc AA līmeņa noteikšanas ar uzturu (p < 0.05). Tikmēr bcl-2 mRNS līmenis tika ievērojami paaugstināts (p < 0.05). Tomēr uztura AA neietekmēja kaspāzes7 ekspresiju (p > 0.{{20}}5). Sašķeltā kaspāzes3 proteīna daudzums gremošanas dziedzerī bija ievērojami samazināts pēc AA papildināšanas (p < 0,05) (6. attēls). Žaunās kaspāzes7 un bcl-2 mRNS līmenis attiecīgi ievērojami pazeminājās un palielinājās pēc AA ar uzturu (p < 0,05) (12. tabula). Neskatoties uz to, Bax un kaspāzes3 izpausmes nebija būtiski atšķirīgas starp visām ārstēšanas metodēm (p> 0, 05). Turklāt šķeltās kaspāzes3 proteīnu ekspresiju pērļgliemenes žaunās neietekmēja AA pakāpes līmenis uzturā (p > 0,05) (6. attēls).

4. Diskusija
4.1. Askorbīnskābes saturs dažādos audos
Šajā pētījumā AA saturs muskuļos, žaunās un gremošanas dziedzeros palielinājās, palielinoties uztura AA līmenim. Līdzīgs rezultāts tika konstatēts arī Vundu (Heterobranchus logfiles), japāņu zušiem un Chu's ķeksīšiem (Nibea krāsa) [27,56,57]. Vislielākais AA saturs bija žaunās, kam sekoja āliņģa gremošanas dziedzeris. Tomēr AA saturs āliņģa žaunās, gremošanas dziedzeros un muskuļos nesasniedza savu piesātinājumu pēc 4821,17 mg/kg AA. Ķīniešu piesūcekņiem (Myxocyprinus asiaticus) AA saturu aknās ievērojami palielināja uztura AA [58]. Palielināts AA saturs ķīniešu zīdītāju aknās pēc AA ēšanas bija saistīts ar aknu veselību. Amūriem AA saturs galvas nierēs, liesā un ādā bija ievērojami paaugstināts, palielinoties uztura AA piedevām [35]. Galvas nieres, liesa un āda ir svarīgi ūdensdzīvnieku imūnsistēmas orgāni [59–61]. Šie rezultāti parāda, ka palielinātais AA saturs āliņģa gremošanas dziedzerī un žaunās bija cieši saistīts ar pērļgliemenes veselību pēc AA uztura un ka AA uzkrāšanās atspoguļo AA iedarbības līmeni uzturā.
4.2. Askorbīnskābes loma pērļgliemenes imunitātes regulēšanā
Hemocīti kā daudzpusīgi gliemju hemolimfas šūnu komponenti ir atbildīgi par daudziem gliemju dzīves aspektiem, piemēram, imūnreakciju, biomineralizāciju, šūnu-šūnu komunikāciju un reģenerāciju [62,63]. Tāpēc hemolimfas THC, RB un PA var tieši atspoguļot organisma imunitāti. AA bija cieši saistīta ar hemocītu THC, RB un PA, kā rezultātā aktivizējās adaptīvā imūnsistēma [64, 65].

Šajā pētījumā THC, RB un PA āliņģa hemolimfā ievērojami palielināja uztura AA. Ir norādīts, ka AA pakāpes līmenis uzturā ļāva uzlabot āliņģa imūno funkciju. Līdzīgi rezultāti tika novēroti Nīlas tilapijā un stiebrzāļu garnelēm (Penaeus monodon) [64,66]. RB sarkano purva vēžu (Procambarus clarkii) serumā un PA hibrīda sorubima sams (Pseudoplatystoma reticulatum × P. corpuscles) serumā ievērojami samazinājās pēc augsta līmeņa AA piedevas (321,38 mg/kg un 850 mg/). kg) [67,68]. Tomēr, ārstējot ar augstu AA piedevu (4821,17 mg/kg), netika novērota būtiska THC, RB un PA samazināšanās pērļgliemenes hemolimfā.
Lizocīmam, C3 un C4 ir galvenā loma iedzimtajā imunitātē un aizsargā dzīvniekus no patoloģiskas infekcijas [69–71]. Šajā pētījumā LZM pērļgliemenes CFH tika ievērojami palielināts pēc klasificēta uztura AA līmeņa. Tas bija līdzīgs iepriekšējo pētījumu rezultātiem ar kobiju (Rachycentron canadum), korejiešu akmeņzivi (Sebastes schlegelii) un spārni (Epinephelus malabaricus) [29,72,73]. AA deficīts samazināja C3 un C4 saturu amūriem, un AA uzturā var ievērojami uzlabot imūno parametrus, piemēram, C3 un C4 lielogu asaros [35,74]. Tomēr šajā pētījumā C4 saturu pērļgliemenes CFH neietekmēja uztura AA līmenis. Pērļgliemenes CFH bija vērojama C3 satura pieauguma tendence, lai gan uztura AA C3 saturu būtiski neuzlaboja. Šie rezultāti atklāja, ka AA uztura papildināšana varētu uzlabot spēju likvidēt patogēnu infekciju ar LZM un C3, nevis C4, lai uzlabotu pērļgliemenes imūnās barjeras.

Iedzimta imunitāte ir ļoti svarīga pērļgliemenei, jo bezmugurkaulniekiem nav adaptīvās imunitātes [43, 49]. TLR ir būtiska loma iedzimtajā imūnsistēmā pret dažādiem mikrobiem [75]. PAMP aktivētie TLR piesaista specifiskas adaptera molekulas, lai aktivizētu transkripcijas faktorus, piemēram, NF-κB un AP-1, kas nosaka iedzimtās imūnās atbildes iznākumu [76]. TLR signalizāciju klasificē divos atšķirīgos ceļos: no MyD88- atkarīgā un no MyD88- neatkarīgā, kas zīdītājiem un citiem ūdensdzīvniekiem inducē dažādus citokīnus, piemēram, TNF- un IL-1 [77,78 ]. MyD{13}}atkarīgajā ceļā MyD88 mijiedarbojas ar IRAK4 un pēc tam mijiedarbojas ar TRAF6 [79]. TRAF6 var aktivizēt TGF- -aktivēto kināzi 1 (TAK1) un TAK{22}}saistošos proteīnus (TAB) [80]. TAK1 aktivizē IKK kompleksu, kas var fosforilēt IκB, kas saistās ar NF-κB apakšvienībām (kas sastāv no p50 un p65), un fosforilē MAPK un JNK, kas veicina AP-1 pārvietošanos kodolā [81]. IκB iznīcināšana atvieglo NF-κB kodoltranslokāciju [82]. Kodola NF-κB un AP-1 ir vērsti uz citokīnu, piemēram, TNF- un IL-1 transkripciju, kas ir labi atzīti kā pro-iekaisuma mediatori, kas veicināja iekaisumu [76,77,83] . MyD88-neatkarīgajā ceļā ir nepieciešams TRAM, un tam šajā ceļā ir galvenā loma [84]. Intracelulārie komponenti lejpus TLR signalizācijas ceļa parasti ir ļoti konservēti starp mugurkaulniekiem un bezmugurkaulniekiem [60, 85]. TLR4 intrahepatiskā ekspresija tika pazemināta pelēm, kurām tika ievadīts AA (Mus musculus) [86]. AA veicināja labvēlīgu hepatoaizsardzību pret konkanavalīna A izraisītu imunoloģisko aknu bojājumu pelēm, inhibējot NF-κB signāla ceļu [87, 88]. Tādējādi no šiem rezultātiem var secināt, ka AA var ietekmēt TLR signalizācijas ceļu. Tomēr joprojām nav zināms, kā AA regulē TLR signalizācijas ceļu ūdensdzīvniekiem, īpaši mīkstmiešiem.

Šajā pētījumā tlr2 un tlr4 mRNS līmeņi gremošanas dziedzerī tika ievērojami pazemināti ar dalītu uztura AA līmeni. Tiek ierosināts, ka TLR signalizācijas ceļu izraisīja AA pērļgliemenes gremošanas dziedzerī (7. attēls). Terminiem-a un tlr-b bija plašākas modeļa atpazīšanas spējas, un tie bija iesaistīti pērļgliemenes antibakteriālajā un pretvīrusu imunitātē [89]; tomēr the-a/b pamatā esošais mehānisms joprojām nav zināms. Tomēr tlr-b līmeni neietekmēja uztura AA, un šajā pētījumā AA ievērojami regulēja tlr-a. Nepieciešama turpmāka izmeklēšana. Myd88, irak4 un traf6 ekspresija un MyD88 proteīna ekspresija pērļgliemenes gremošanas dziedzerī tika pazemināta, papildinot AA, un traf4 līmeni neietekmēja uztura AA. TRAF4 darbojas kā trokšņa slāpētājs TLR mediētajā signalizācijā, nomācot TRAF6 [90]. Ir norādīts, ka TLR ceļa inhibīcija ar uztura AA netika veikta caur traf4 pērļgliemenes gremošanas dziedzerī. AA neietekmēja iκb mRNS līmeni gremošanas dziedzerī. Tomēr NF-κB var pārnest uz kodolu tikai pēc IκB fosfāta sadalīšanās [91]. nf-κb mRNS ekspresija un kodola NF-κB p65 proteīna ekspresija gremošanas dziedzerī tika ievērojami samazināta ar uztura AA. Šie rezultāti liecināja, ka AA var nomākt IκB proteīna fosforilēšanos, lai samazinātu kodola NF-κB. IKK var aktivizēt NF-κB p65, lai aktivizētu NF-κB kanonisko ceļu, un IKK var aktivizēt NF-κB p52, lai aktivizētu NF-κB nekanonisko ceļu [92]. Ir norādīts, ka uztura AA var aktivizēt NF-κB kanonisko ceļu pērļgliemenes gremošanas dziedzerī. Turklāt ar uztura AA ievērojami samazināja tram, p38 mark, junk, ap-1 un tnf- mRNS ekspresiju, kā arī nobriedušā IL-1 olbaltumvielu līmeni. Šie rezultāti liecina, ka uztura AA varētu kavēt TLR signālu ceļu caur Myd88-atkarīgo ceļu caur NF-κB, p38 mark/ap-1 un JNK/ap-1 un Myd{{ 43}}neatkarīgi ceļi āliņģa gremošanas dziedzera iekaisuma mazināšanai. Žaunās AA ietekmēja arī TLR signalizācijas ceļu (7. attēls). Tomēr nobriedušā IL-1 tramvaja, p38 zīmes un nevēlamā un olbaltumvielu ekspresijas mRNS līmenis būtiski neatšķīrās. Šie rezultāti norādīja, ka uztura AA var nomākt TLR signālu ceļu caur Myd{47}}atkarīgo ceļu, nevis MyD{48}}neatkarīgo. Inhibētais TLR ceļš mazināja iekaisumu pērļgliemenes žaunās, izmantojot NF-κB un p38 mark/ap-1 ceļu, nevis JNK/ap-1 ceļu. Uztura AA bija spēcīgāka ietekme uz TLR ceļu gremošanas dziedzerī nekā āliņģa žaunās.

【Lai iegūtu plašāku informāciju:george.deng@wecistanche.com / WhatApp:8613632399501】